※本ブログはGoogleアドセンス広告を利用しています。
こんにちは!陣内です。
臨床で微弱電流を使用するとき筋損傷や腱・靱帯損傷などの組織修復を目的に施術することがあります。
微弱電流の作用機序としてはATP産生やタンパク質合成、炎症反応への影響などが取り上げられることが多いと思います。
しかし、組織が修復されるためには細胞が増殖したりタンパク質を合成したりするだけでは十分ではありません。
損傷部には炎症細胞が集まり修復の段階に応じて線維芽細胞などが移動します。皮膚の創傷では、ケラチノサイトが創面を覆うように移動することも重要です。
このような細胞の移動を細胞遊走(cell migration)と呼びます。
細胞遊走を誘導する要因には化学物質の濃度勾配や細胞外基質の構造などがありますがその一つに電場があります。
細胞が電場に応じて移動方向を変える現象は電気走性(electrotaxis)あるいは走電性(galvanotaxis)と呼ばれています。
では細胞はどのように電場の方向を認識しているのでしょうか。
また臨床で使用する微弱電流でも同じような細胞遊走が起こるのでしょうか。
電気走性の基礎研究では培養細胞に一定の電場強度を与える実験が多く行われています。一方、臨床の微弱電流療法では電流値や周波数、波形などを設定して刺激を加えます。
両者は同じ電気刺激でも、物理的な条件が必ずしも一致しません。
以前、外傷性浮腫に対するハイボルテージ・微弱電流などの作用について考察しました。今回は組織修復をもう少し細胞レベルから捉え、電場が細胞の移動に与える影響を中心に考えていきます。
今回も基礎研究を踏まえて考察していますが研究結果をそのまま臨床に当てはめるのではなく私自身の臨床経験や解釈、仮説も含めて整理しています。内容を鵜呑みにせず、ご自身でも調べ、検証しながら臨床に活かしていただければと思います。
今回も沼記事なので最後までお付き合いください‼
細胞は電場に沿って移動する
電気走性とは何か
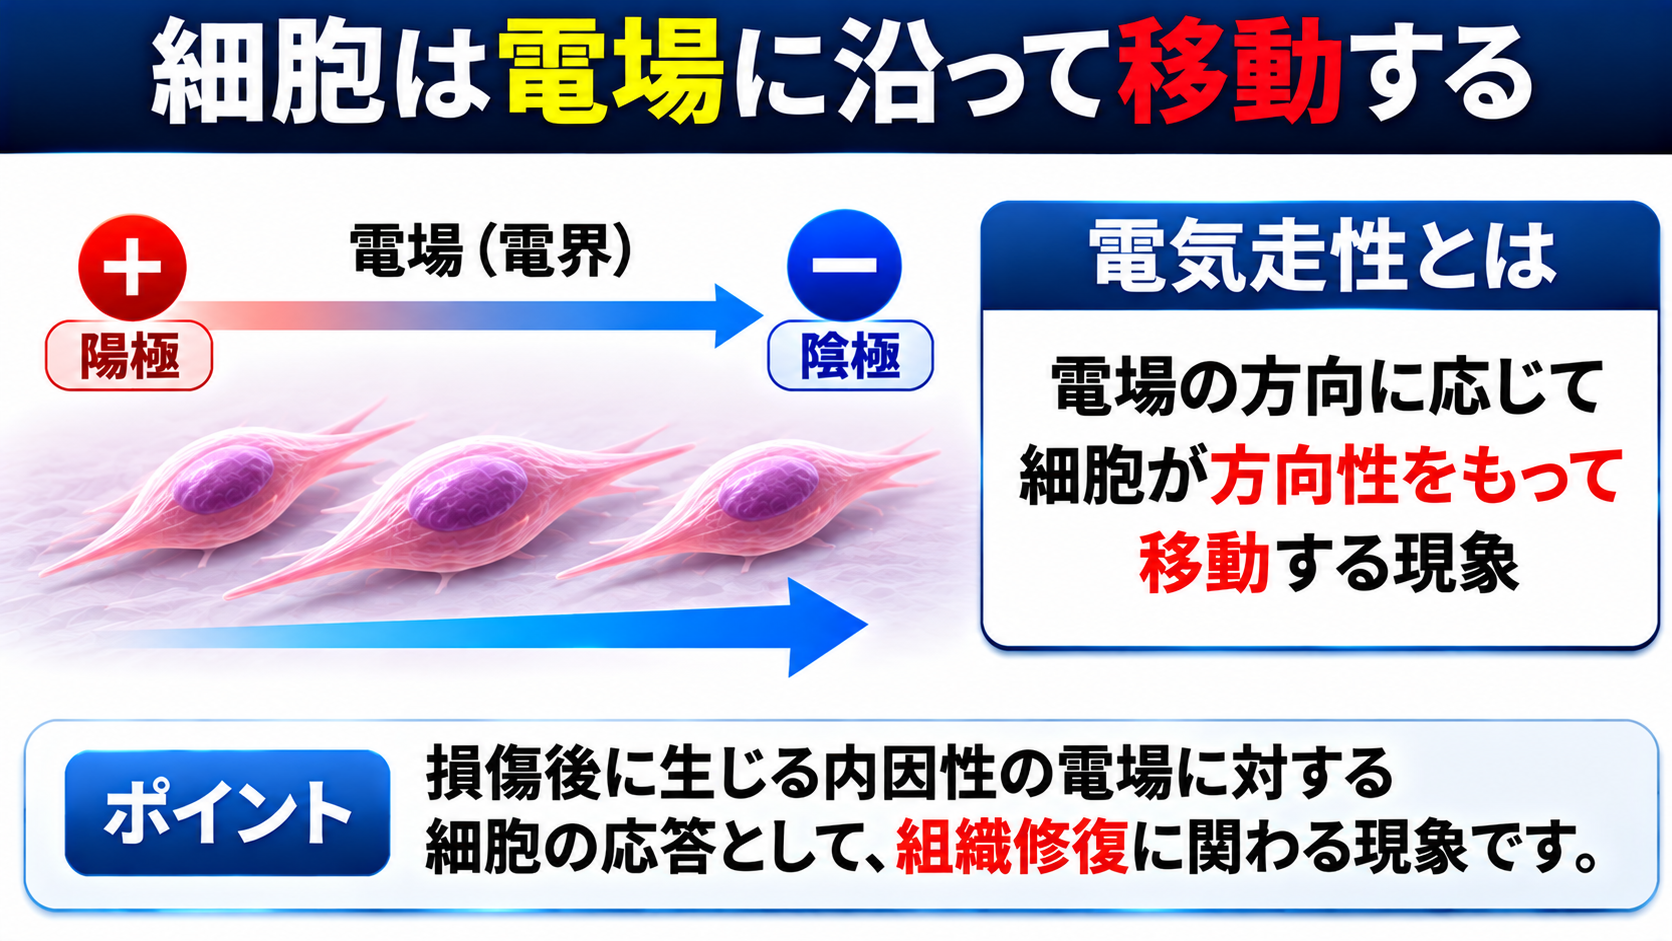
電気走性とは細胞が電場に応答して一定方向へ移動する現象です。
例えば培養細胞に直流電場を加えると細胞が陰極あるいは陽極方向へ偏って移動することがあります。
ここで重要なのは細胞全体が単純に電極へ引き寄せられているわけではないということです。
細胞は電場に応答して細胞内のシグナルや細胞骨格を変化させ自ら移動します。
この能動的な方向性のある移動が電気走性です。
細胞の移動方向は一様ではありません。細胞の種類や状態、電場強度、刺激時間、周囲の環境によって反応が異なります。
細胞が速く動くことと、一定方向へ移動することは違う
電気走性を理解するうえで最初に整理しておきたいのが細胞の移動速度と方向性の違いです。
電場を加えたことで細胞が活発に動くようになったとしても移動方向がばらばらであれば電気走性が起きたとは判断できません。
反対に移動速度がほとんど変わらなくても陰極あるいは陽極方向への移動が増えれば電気走性が生じたと評価できます。
細胞遊走の研究では以下のような指標が使用されます。
| 評価指標 | 評価する内容 |
|---|---|
| Directedness | 電場方向に対する移動の偏り |
| Migration speed | 細胞が移動した経路長に基づく速度 |
| Net displacement | 開始点から終了点までの正味の変位 |
| Persistence | 移動方向を維持する程度 |
| Wound closure | 培養細胞層などの創傷閉鎖率 |
Directednessは細胞の移動方向が電場方向に対してどの程度そろっているかを評価する指標です。
例えば移動方向と電場方向のなす角度をθとした場合、cosθを利用して方向性を評価する方法があります。
陰極方向を正と定義すれば、陰極へ向かう細胞では正の値、陽極へ向かう細胞では負の値になります。
一方、Migration speedは細胞が実際に移動した経路の長さを時間で割ったものです。
細胞が何度も方向転換しながら動いている場合移動速度が高くても正味の変位は小さくなることがあります。
この違いは後半で紹介する靱帯線維芽細胞やT細胞の研究でも重要になります。
TaxisとKinesisの違い
もう一つ整理しておきたいのがTaxisとKinesisの違いです。
Taxisは刺激の方向に対して移動方向が偏る現象です。
一方、Kinesisは刺激によって運動速度や方向転換の頻度などが変化するものの、刺激の方向に対する一定の移動方向を持たない反応を指します。
例えば電場刺激によって細胞の移動速度だけが増加し方向性に変化が認められなかった場合電気走性が促進されたとは言えません。
その結果をKinesisとして説明するためにも刺激によって細胞の運動特性がどのように変化したのかを評価する必要があります。
この区別は臨床で使用する直流、単相性パルス、二相性パルスなどを考える際に重要になります。
損傷した組織には電場が形成される
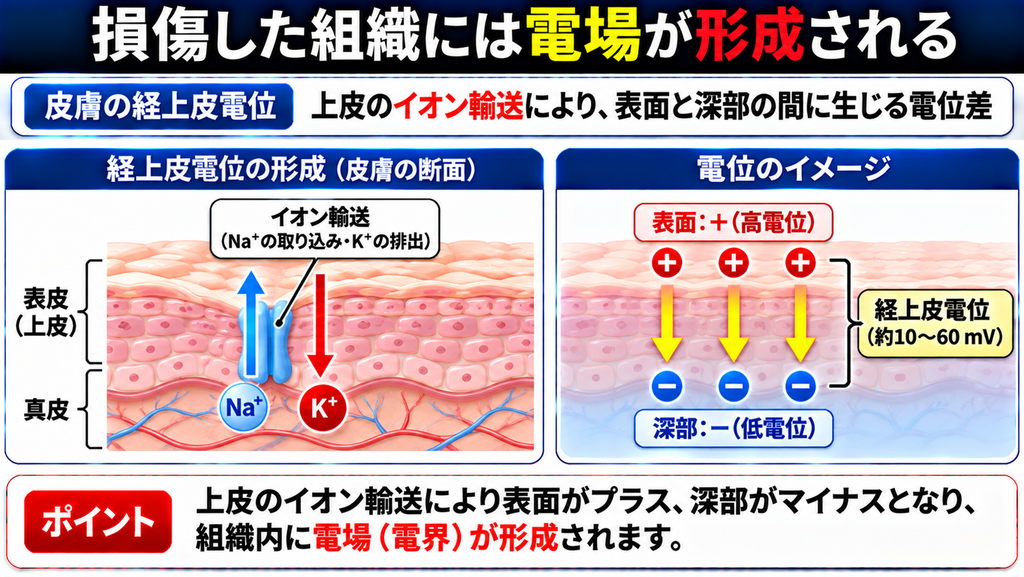
皮膚の経上皮電位はどのように形成されるのか
私たちの身体では細胞膜を介したイオン輸送によって電位差が形成されています。
細胞膜にはナトリウムイオンやカリウムイオンなどを輸送するポンプやチャネルが存在しており細胞内外のイオン分布を維持しています。
また、皮膚などの上皮組織では上皮細胞による方向性のあるイオン輸送と細胞間のバリア機能によって上皮層を横切る電位差が形成されます。
これを経上皮電位(transepithelial potential)と呼びます。
経上皮電位は個々の細胞の膜電位とは異なります。
細胞膜の内外に存在する電位差と上皮組織全体を横切る電位差は区別する必要があります。
創傷電流はどのように発生するのか
皮膚が損傷すると上皮の連続性が失われます。
すると損傷部ではそれまで維持されていた経上皮電位が局所的に短絡されます。
一方、周囲の正常な上皮では電位差が維持されているため損傷部との間に電位勾配が生じます。
この電位勾配によって創傷周囲に電場が形成され組織内に電流が流れることがあります。
これが創傷電流(injury current)と呼ばれる現象です。
創傷電流は、損傷した細胞から単純に電気が漏れ出すという説明だけでは不十分です。
上皮のイオン輸送によって維持されていた電位差と、損傷による電気的な経路の変化が関係しています。
また、創傷周囲の電場は一様ではありません。
創傷の位置や深さ、上皮の状態、イオン輸送、組織の導電率などによって電場の分布は変化します。
創傷周囲にはどの程度の電場が存在するのか
Nuccitelliらは2008年にマウスおよびヒトの皮膚創傷周囲に形成される電場を測定しました。
この研究では皮膚表面に直接接触しない測定装置を使用し創傷近傍の電位分布を評価しています。
マウスの創傷直後には177 ± 14 mV/mmの電位勾配が報告されました。
この値は創傷近傍の表面側の電気的環境を反映したものです。
表皮内部や真皮、筋組織のすべてに同じ強さの電場が存在するという意味ではありません。
また、2011年の研究ではヒトの皮膚創傷周囲の電場について年齢による違いが検討されています。
若年者では高齢者より創傷周囲の電場が大きいことが報告されました。
一方、電場の大きさと創傷治癒速度の関係は単純ではありません。
生体内に電場が存在することとその電場の大きさが治癒速度を決定することは別の問題です。
それでも、損傷した上皮組織に形成される電場が細胞の移動方向を制御する可能性は電気走性を研究する重要な背景となっています。
筋線維が損傷した場合にも電場は生じるのか
ここまでは皮膚の経上皮電位を中心に説明しましたが筋組織では電気的な環境が異なります。
骨格筋の筋線維には通常約−90 mVの静止膜電位が存在します。
この電位差は筋線維の細胞膜である筋鞘を介したイオン濃度の違いとイオンチャネルやポンプの働きによって維持されています。
筋線維が断裂して筋鞘が破綻すると損傷部ではイオンの透過性が変化し局所的な脱分極が生じることがあります。
その結果、膜電位を維持している健常部と損傷部との間に電気的な不均一性が生まれ局所的な傷害電流や電位勾配が形成されると考えられます。
これは皮膚の経上皮電位が短絡する仕組みとは異なり筋線維の細胞膜電位の変化に由来するものです。
もっとも筋損傷のすべてで筋鞘が破綻するわけではありません。
筋原線維や興奮収縮連関の障害が中心となる場合もあり膜損傷の程度は損傷様式によって異なります。
また、筋線維の静止膜電位が約−90 mVであることから損傷部に90 mV/mmの電場が形成されると計算できるわけではありません。
膜電位は細胞膜を挟んだ電位差です。一方、電気走性で問題になるのは、細胞が存在する空間に形成される電場です。
筋線維の膜損傷によって局所的な電流が生じることと、その電流が周囲の修復細胞に方向性のある遊走を誘導することは、別々に検証する必要があります。
腱ではどのような電気的変化が生じるのか
腱ではさらに事情が異なります。
腱はコラーゲンを主体とした組織であり機械的な変形に伴う圧電応答や組織液の移動に関連した流動電位などが研究されています。
圧電応答は特定の材料に機械的な変形を加えた際に電気的な分極が生じる現象です。
一方、流動電位は荷重によって組織内の液体が移動する際に生じる電気的な現象です。
どちらも腱の電気的な性質を考えるうえで重要ですが機械的な負荷によって生じる電位と損傷後に持続する創傷電場は同じ現象ではありません。
皮膚では創傷周囲の電場が直接測定されています。
筋や腱の損傷部については細胞の電気走性を誘導するほどの電場がどの方向に、どの程度の強さで、どれくらい持続するのかを示す研究が十分ではありません。
つまり、筋や腱にも電気的な変化が生じる可能性はありますが皮膚の創傷電場と同じ仕組みや強さを想定することはできません。
筋・腱の修復を電気走性と結びつけるには組織ごとの電気的環境を考える必要があります。
細胞はどのように電場を感知するのか
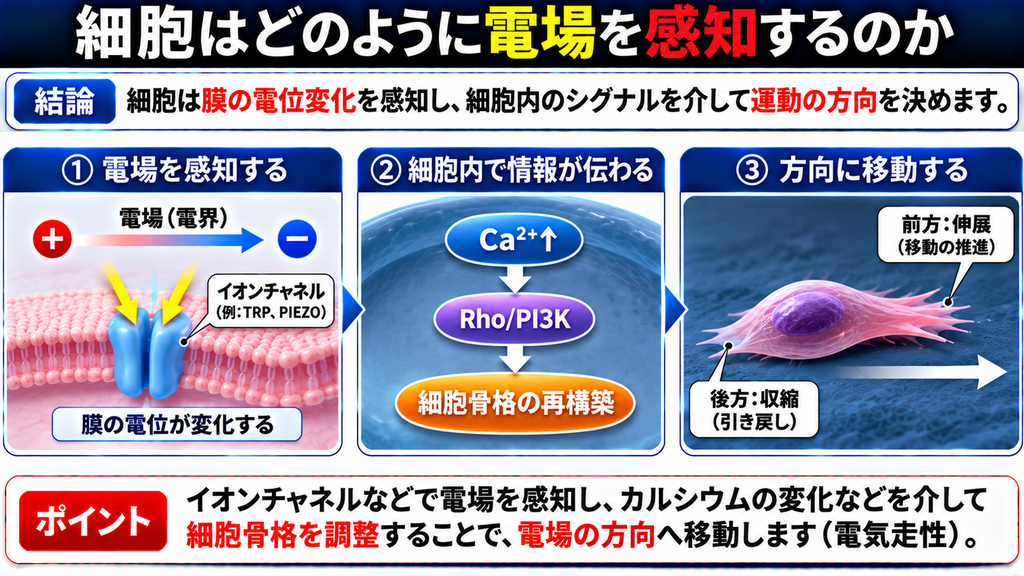
細胞が電場の方向に沿って移動するためには電場に応答する仕組みとその情報を細胞運動へ変換する仕組みが必要です。
これまでの研究では、細胞膜上の分子分布、細胞内シグナル、細胞骨格などが関与することが報告されています。
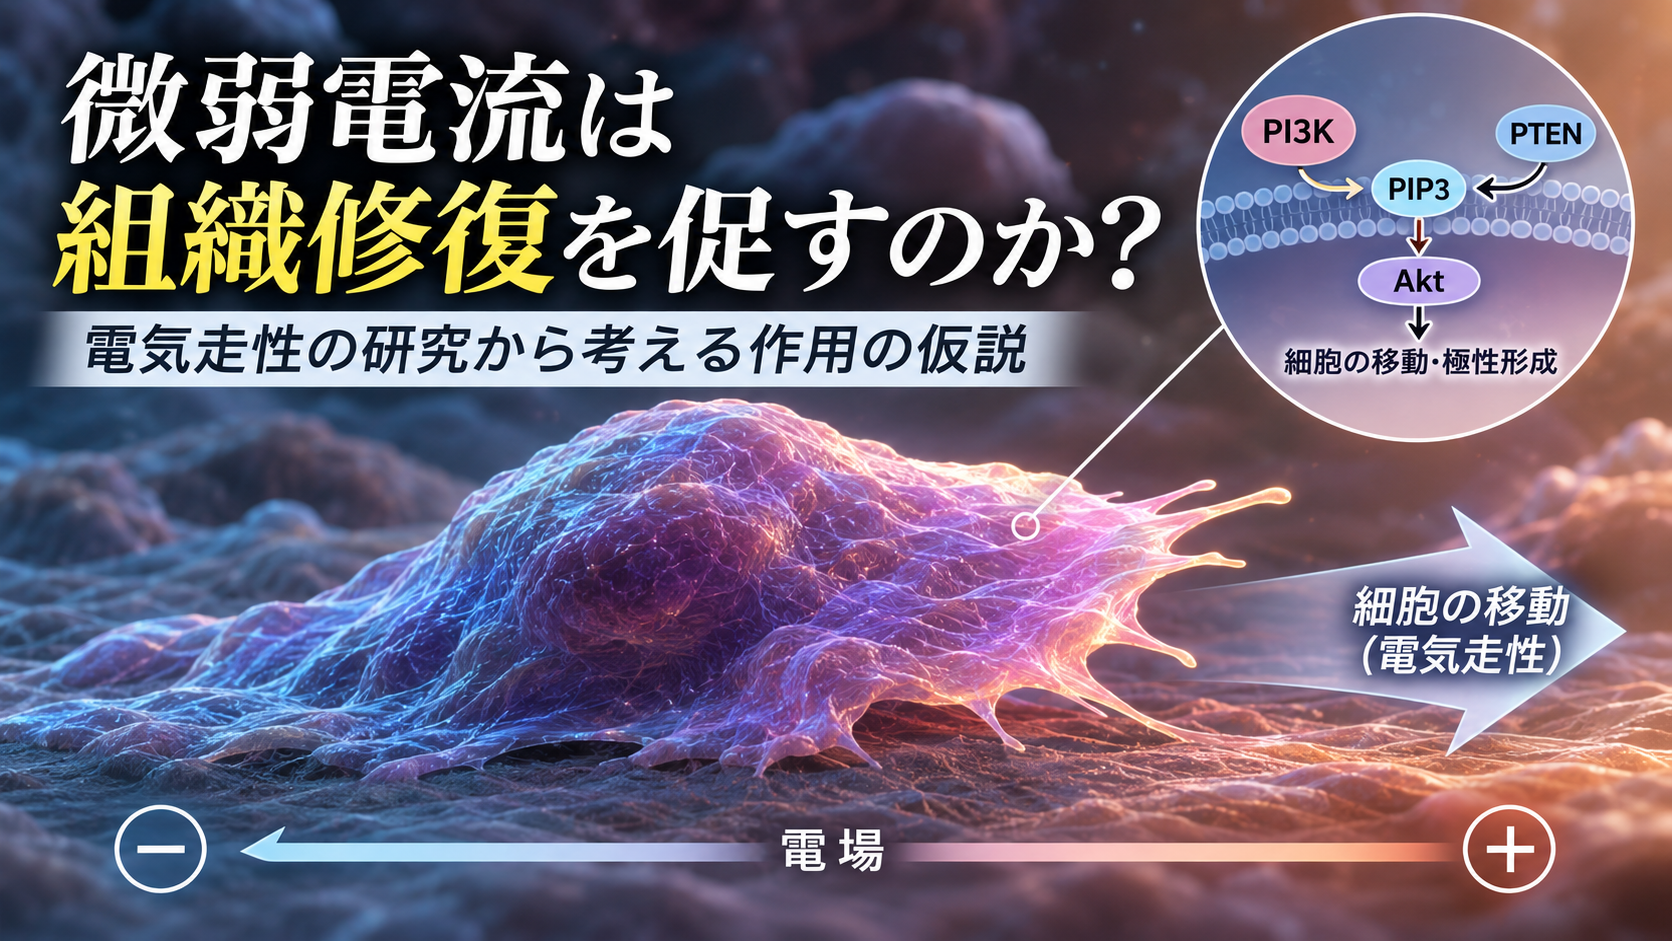
PI3K/PTENによる細胞内の極性形成
Zhaoらは2006年にNature誌で電場による細胞遊走と創傷修復に関係する分子機序を報告しました。
この研究では生理的な強さの電場が細胞の移動方向を制御することを示すとともにPI3KγやPTENの役割を検討しています。
PI3Kは細胞膜のリン脂質をリン酸化し細胞運動などに関係するシグナルを活性化する酵素です。
PI3Kの働きによってPIP3が形成されるとAktなどのシグナル分子が細胞膜へ集積し細胞の運動や形態変化に関係する反応が生じます。
一方、PTENはPIP3を脱リン酸化しこのシグナルを抑制する方向に働きます。
Zhaoらの研究ではPI3Kγを欠損させると電場による細胞内シグナルが低下し方向性のある細胞移動が著しく障害されました。
反対にPTENを欠損させると電場によるシグナルや電気走性が増強されました。
この結果は、電場による細胞遊走が細胞内のシグナル伝達によって制御されていることを示しています。
PI3K/PTENは電場を感知した後の細胞内反応を理解するうえで重要な分子ですが、電場を最初に感知する分子そのものとして同定されたわけではありません。
この仕組みを車の運転に例えるとPI3Kはアクセル、PTENはブレーキのような役割を持っています。
細胞が一定方向へ移動するためには進行方向となる側で細胞膜を突出させ反対側では不要な突出を抑える必要があります。
PI3Kは細胞の移動に関係するシグナルを強めPTENはそのシグナルを抑える方向に働きます。
Zhaoらの研究ではPI3Kγが働かなくなると電場に沿った移動が難しくなりPTENが働かなくなると方向性のある移動が強まりました。
つまり、細胞は電場によって単純に引っ張られているのではなく細胞内のアクセルとブレーキに相当する仕組みを調節しながら移動していると考えられます。
実際には移動速度だけでなく細胞のどの部分でシグナルを強めるかという空間的な調節が重要になります。
細胞骨格と細胞外基質への接着
細胞は移動方向を決めるだけでは移動できません。
移動する方向へ細胞膜を突出させ、周囲の基質に接着し、細胞体を前方へ移動させる必要があります。
この過程にはアクチン細胞骨格やミオシン、インテグリンなどが関与します。
アクチンは細胞の形態を維持するだけでなく細胞膜の突出や移動に重要な役割を果たします。
インテグリンは細胞外基質と細胞内の骨格を結びつける接着分子です。
Tsaiらは2013年に靱帯線維芽細胞を用いて電場による細胞遊走の方向性にα2β1インテグリンやRhoAが関与することを報告しました。
この研究では移動速度と方向性が分離して変化することも示されています。
電場によって細胞の移動速度が変化する仕組みと、移動方向が決まる仕組みは、必ずしも同じではないということです。
Galvanin(TMEM154)という電場センサー
2026年にBelliveauらはCell誌で、Galvanin(TMEM154)という膜タンパク質が電場の感知に関与することを報告しました。
この研究は、細胞が電場の方向をどのように認識するのかという疑問に踏み込んだものです。
研究では機能ゲノミクス解析などによってGalvaninが電場に沿った細胞遊走に必要であることを示しました。
また、もともと電気走性を示さない上皮細胞にGalvaninを発現させると方向性のある遊走が誘導されました。
さらに電場を加えるとGalvaninは細胞の陽極側へ再分布しました。
ヒト好中球ではこの再分布に続いて細胞の突出と退縮の空間的なパターンが変化しました。
これらの結果はGalvaninが電場の方向に関する情報を細胞内の運動機構へ伝える分子として働くことを支持しています。
従来のPI3K/PTEN研究が細胞内シグナルを中心に説明していたのに対しGalvanin研究は電場の感知そのものに踏み込んでいる点が重要です。
両研究は電気走性の異なる段階を理解するうえで重要ですが、GalvaninからPI3K/PTENへと情報が伝達される一連の経路が確立されたわけではありません。
細胞が電場を感知し、その情報を細胞骨格の再編成へ変換する過程には、まだ解明すべき部分が残されています。
細胞によって移動する方向は異なる
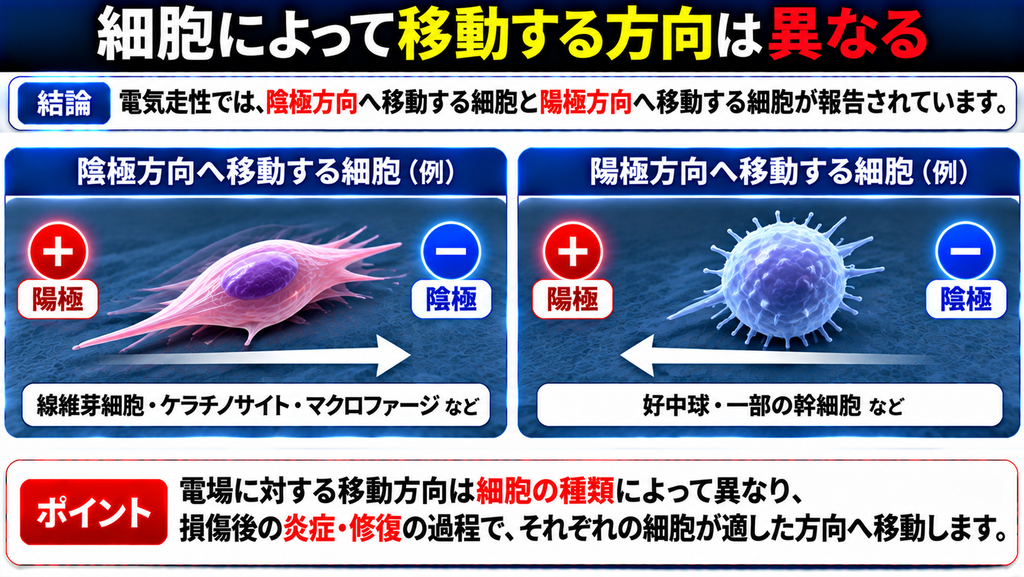
電気走性の研究では陰極方向へ移動する細胞と陽極方向へ移動する細胞が報告されています。
代表的な研究を整理すると次のようになります。
| 細胞 | 報告された移動方向 | 主な研究 |
|---|---|---|
| ケラチノサイト | 陰極 | Renら 2019 |
| ヒト皮膚線維芽細胞 | 陽極 | Guoら 2010 |
| マクロファージ | 陽極 | Hoareら 2016 |
| 単球 | 陰極 | Hoareら 2016 |
| T細胞 | 培養環境によって異なる | Endeら 2024 |
これらは各研究の実験条件で報告された方向です。
細胞種ごとに常に移動方向が固定されているという意味ではありません。
線維芽細胞では刺激時間も重要になる
Sillmanらは2003年にヒト皮膚線維芽細胞に生理的な強さの直流電場を加えました。
しかし、検討した条件では明確な方向性のある遊走を確認できませんでした。
一方、Guoらは2010年にヒト皮膚線維芽細胞へ50〜100 mV/mmの電場を加え長時間の刺激によって陽極方向への遊走を報告しています。
さらに400 mV/mmの電場では比較的短い時間でも方向性のある遊走が認められました。
この違いを考えると細胞が電場に反応するかどうかを判断する際には電場強度だけでなく刺激時間や観察時間も重要になります。
両研究は培養条件なども異なるため刺激時間だけが結果の違いを生んだとは言えませんが電気走性が単純な刺激強度だけで決まるものではないことが分かります。
細胞の状態によっても移動方向が変わる
Hoareらは2016年にヒト単球由来マクロファージが陽極方向への遊走を示すことを報告しました。
同じ研究ではマクロファージの前駆細胞である単球は反対の陰極方向へ移動しています。
また、電場刺激はマクロファージの貪食機能などにも影響しました。
Sunらは2019年にサルモネラ感染に伴うマクロファージの電気走性を検討しました。
通常のマクロファージは陽極方向へ移動しましたがサルモネラを取り込んだ後には陰極方向への遊走が観察されました。
この変化には細胞表面のシアル酸の減少が関係していました。
同じ細胞種でも感染などによって細胞の状態が変わると電場への応答が変化する可能性があります。
臨床で組織修復を考える場合にも損傷直後と修復が進んだ段階では細胞の状態や構成が異なります。
電極の極性を考える際には単純に「陰極が修復を促す」「陽極が修復を促す」といった説明では不十分です。
二次元培養の細胞遊走は、三次元組織内でも起こるのか
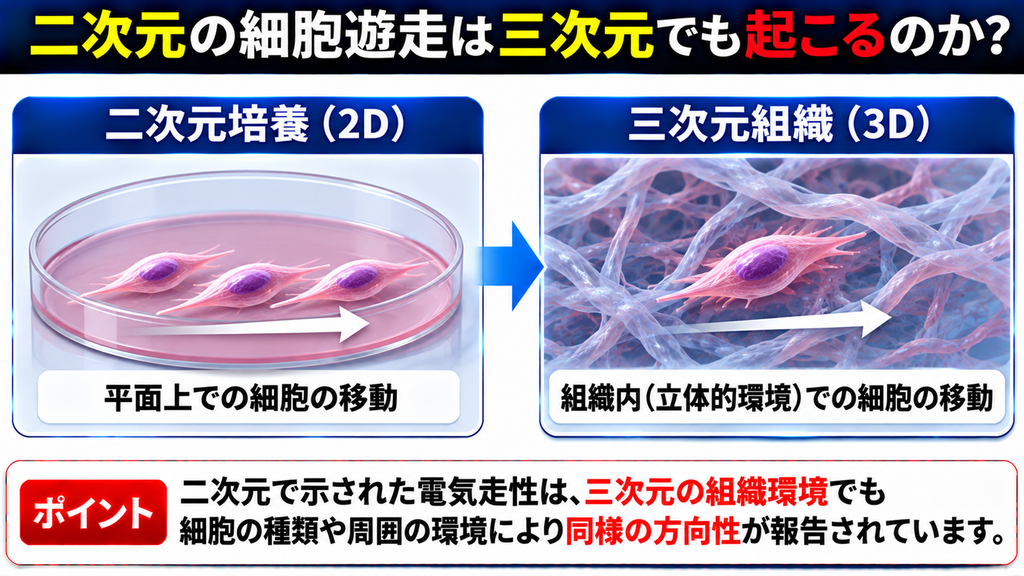
ここまで紹介した研究の多くは培養皿やコーティングされた基板上で細胞の移動を観察したものです。
しかし、実際の組織内では細胞が自由に平面上を移動できるわけではありません。
この違いは電気走性の基礎研究を組織修復へ結びつける際に重要です。
二次元と三次元では移動環境が異なる
二次元培養では細胞は主に基板表面に接着しながら移動します。
一方、三次元組織内ではコラーゲンなどの細胞外基質が細胞の周囲を取り囲んでいます。
細胞が移動するには線維の間を通過したり細胞体や核を変形させたりする必要があります。
場合によっては、周囲の基質を分解・再構築することも必要になります。
そのため、電場によって細胞内に移動方向が形成されても周囲の組織構造によって実際の移動が制限される可能性があります。
三次元環境で細胞の移動速度が低下したとしても電場に対する方向性まで低下するとは限りません。
移動速度と方向性は別々に評価する必要があります。
三次元環境では電場に対する細胞応答が変わる
Sunらは2004年にヒト線維芽細胞を二次元基板と三次元コラーゲンゲルに配置し電気刺激に対する細胞移動を比較しました。
研究では0.1 V/cmすなわち10 mV/mmの直流電場を使用しています。
その結果、三次元コラーゲンゲル内では細胞移動が誘導されましたが同じ名目上の刺激条件で二次元培養の細胞運動には有意な変化が認められませんでした。
また、三次元での細胞移動はコラーゲン濃度によっても変化しました。
この結果は、細胞が置かれている環境によって電気刺激への応答が異なる可能性を示しています。
二次元と三次元では、細胞の接着状態や細胞外基質の構造が異なります。
さらにコラーゲンゲルの存在によって、細胞周囲の局所電場や電流密度も変化する可能性があります。
そのため、結果の違いを細胞外基質の立体構造だけで説明することはできません。
三次元では移動方向そのものが変わる場合がある
Endeらは2024年に、ヒトCD4陽性T細胞とCD8陽性T細胞の電気走性を二次元基板と三次元コラーゲン環境で比較しました。
研究では25〜200 mV/mmの範囲の直流電場を使用しています。
二次元環境では、CD4陽性T細胞とCD8陽性T細胞の両方が陽極方向へ移動しました。
しかし三次元環境では、CD4陽性T細胞は陰極方向、CD8陽性T細胞は陽極方向への遊走を示しました。
| 細胞 | 2D環境 | 3D環境 |
|---|---|---|
| CD4陽性T細胞 | 陽極方向 | 陰極方向 |
| CD8陽性T細胞 | 陽極方向 | 陽極方向 |
この研究は、同じ細胞であっても培養環境によって電場に対する方向性が変わる可能性を示しています。
また、三次元環境では電場強度によって方向性が変化した一方、移動速度には有意な変化が認められませんでした。
電場によって細胞の移動方向が制御されても、必ずしも移動速度が増加するわけではないことが分かります。
実際の組織内には複数の方向づけの要因がある
実際の組織では、細胞は電場だけを手がかりに移動しているわけではありません。
炎症性メディエーターや成長因子による濃度勾配、細胞外基質の配向、組織の硬さなども細胞の移動に影響します。
代表的な方向づけの要因には以下のようなものがあります。
| 現象 | 主な方向づけの要因 |
|---|---|
| Electrotaxis | 電場 |
| Chemotaxis | 化学物質の濃度勾配 |
| Haptotaxis | 接着性分子などの基質上の勾配 |
| Durotaxis | 基質の硬さの勾配 |
| Contact guidance | 線維などの構造的な配向 |
例えば腱や靱帯では、コラーゲン線維が一定方向に配向しています。
細胞がその線維に沿って移動した場合、それが電場による方向づけなのか、基質の配向による影響なのかを区別する必要があります。
実際の組織内では、複数の方向づけの要因が同時に存在しています。
二次元培養で確認された電気走性を組織修復へ結びつけるには三次元環境での細胞応答を考える必要があります。
筋・腱・靱帯の細胞にも電気刺激は作用するのか
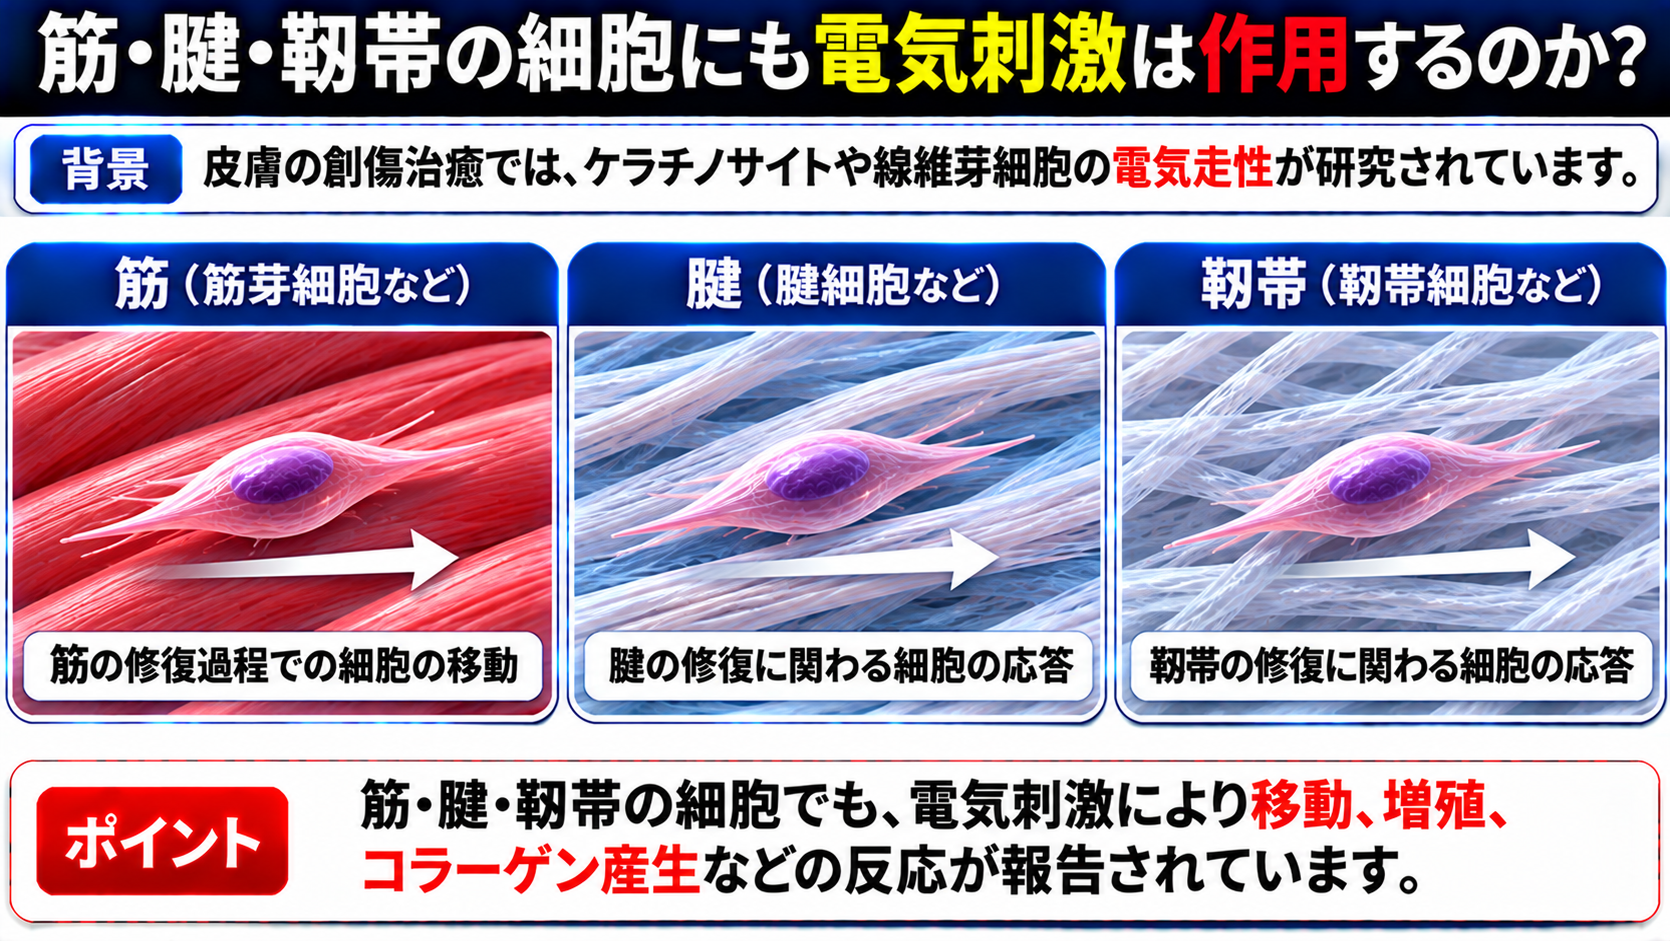
皮膚の創傷治癒ではケラチノサイトや線維芽細胞の電気走性が研究されてきました。
ではスポーツ障害で対象となる筋・腱・靱帯ではどうでしょうか。
ここでは細胞遊走を直接評価した研究と増殖や分化などを評価した研究を分けて考えます。
靱帯線維芽細胞の電気走性
Chaoらは2007年にウシの前十字靱帯由来線維芽細胞へ持続直流やパルス直流電場を加えました。
その結果、電気刺激によって細胞の移動速度や配向が変化しました。
またパルス電場によってⅠ型コラーゲンの発現が増加しました。
一方、培養創傷モデルでは持続直流電場が創傷閉鎖を抑制する反応も認められパルス電場ではその抑制が軽減されました。
この結果は重要です。
電気刺激によって細胞の移動速度が増加しても培養創傷の閉鎖が必ずしも促進されるわけではありません。
細胞の移動速度、方向性、配向、細胞外基質への接着などが複雑に関係していると考えられます。
さらにTsaiらの2013年研究では、靱帯線維芽細胞の電場による方向性のある移動にα2β1インテグリンとRhoAが関与することが示されました。
この研究では移動速度と方向性が分離して変化することも報告されています。
靱帯線維芽細胞においても電気刺激によって細胞が速く動くことと一定方向へ移動することは同じではありません。
腱細胞では増殖やコラーゲン合成も変化する
Clearyらは1988年にニワトリの腱組織を用いて電気刺激と線維芽細胞増殖の関係を検討しました。
刺激条件は1 Hz、パルス幅1 msの単極性矩形パルスで、4日間の刺激を行っています。
平均電流密度7 mA/m²では細胞増殖が32%増加しました。
一方、1.8 mA/m²では増殖への影響が認められず10 mA/m²を超える条件では増殖や相対的なコラーゲン合成が抑制されました。
また組織の配向方向によって反応が異なることも報告されています。
ここで注意したいのは、平均電流密度とピーク電流密度の違いです。
この研究では平均電流密度7 mA/m²に対し、ピーク電流密度は7 A/m²でした。
両者には1,000倍の差があります。
パルス刺激を比較する場合、平均値だけでは瞬間的に組織へ加わる刺激の大きさを判断できません。
なお、この研究は細胞増殖やコラーゲン合成を評価したものであり、電気走性を直接測定したものではありません。
電気刺激によって細胞機能が変化することと、細胞が電場に沿って移動することは分けて考える必要があります。
筋芽細胞では分化への影響が研究されている
筋組織についてはC2C12筋芽細胞を用いた研究などで電気刺激による筋分化や筋管形成への影響が報告されています。
また、細胞の配向方向と電場の方向を組み合わせることで、筋芽細胞の成熟や融合が変化した研究もあります。
これらは筋芽細胞の分化や成熟を評価したものであり、損傷部へ向かう筋衛星細胞の電気走性を直接示したものではありません。
筋損傷後の修復を考えるうえでは、筋衛星細胞の活性化、増殖、遊走、分化、融合をそれぞれ区別する必要があります。
電気刺激が筋分化に影響することと電場によって筋衛星細胞が損傷部へ誘導されることは同じではありません。
どのような電気刺激で細胞は移動するのか
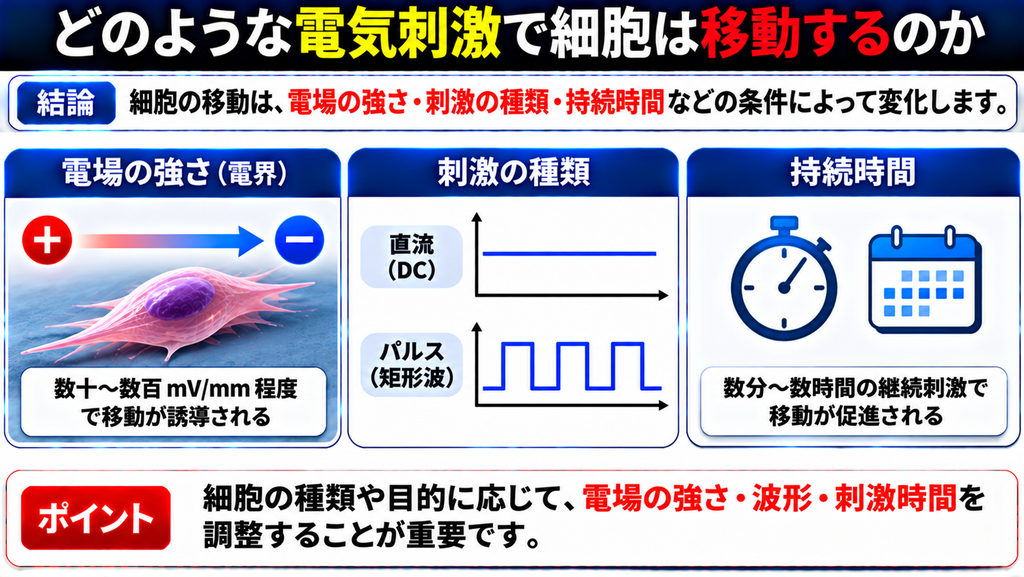
ここからは電気刺激の条件について考えていきます。
臨床では周波数や電流値を設定することが多いと思いますが細胞遊走の基礎研究では電場強度が重要な指標として使用されています。
電場強度と電流値は同じではない
臨床で微弱電流を使用するとき機器に表示される電流値を確認することが多いと思います。
しかし、同じ100 μAを流しても標的組織に加わる電気刺激が同じになるとは限りません。
ここで重要になるのが電流密度です。
電流密度とは、単位面積あたりを流れる電流の大きさを表します。
電流が均一に流れる単純な導電体であれば、次の式で求められます。
J = I / A
- J:電流密度(A/m²)
- I:電流(A)
- A:電流が通過する断面積(m²)
例えば100 μAの電流が1 cm²の断面を均一に通過すると仮定すれば、電流密度は1 A/m²です。
同じ電流が10 cm²の断面を通過する場合、電流密度は0.1 A/m²になります。
電流値が同じでも、電流が通過する面積によって電流密度は変化します。
さらに、均一で等方的な導電体では、電流密度と電場強度の間に次の関係があります。
J = σE
- σ:導電率(S/m)
- E:電場強度(V/m)
つまり、電場強度は電流密度だけでなく、組織の導電率によっても変化します。
ここで臨床を考えてみます。
同じ100 μAを使用しても、電極の面積や配置、標的組織の形状が異なれば電流の分布は変化します。
例えば大腿部と指では、組織の断面積や構成、電流が通る経路が異なります。
さらに実際の人体では、皮膚、皮下脂肪、筋、腱などが異なる導電率を持ち、電流は複数の経路へ分岐します。
そのため、機器から流れた100 μAが特定の筋や腱の断面全体を均一に通過するわけではありません。
定電流方式の機器であっても、設定された電流値から標的組織の局所電流密度を直接求めることはできません。
電気走性の基礎研究で使用される100 mV/mmという電場強度と、臨床機器で設定する100 μAという電流値を比較するには、電流の分布、導電率、電極配置、標的組織の位置を考える必要があります。
この電流密度の違いは、鍼電極とパッド電極を比較するときにも重要です。以前の鍼に微弱電流を流す意味とは?パッド通電との違いを電気・生理学から考えるでも、電極の形状と電流分布の関係を取り上げています。
持続直流とパルス直流では反応が異なるのか
Renらは2019年に、初代ケラチノサイトを用いてパルス直流電場による電気走性を検討しました。
代表的な刺激条件は以下のとおりです。
| 項目 | 条件 |
|---|---|
| 電場強度 | 150 mV/mm |
| 周波数 | 0.1 Hz |
| Duty比 | 60% |
| 波形 | パルス直流 |
この条件で明確な方向性のある細胞遊走が確認されました。
また、電場強度とDuty比が反応に関係し、検討した周波数範囲では方向性への影響は限定的でした。
原著では0.001〜1,000 Hzの範囲について、周波数による明確な依存性が認められなかったことが報告されています。
ここで重要なのは、この研究が一方向性のパルス直流を用いていることです。
正負の極性が交互に入れ替わる二相性パルスでも同じ結果になるという意味ではありません。
0.1 Hzでは1周期が10秒です。
Duty比60%であれば、単純な矩形パルスを仮定すると6秒間の通電と4秒間の休止を繰り返すことになります。
一方、1,000 Hzでは1周期が1 msです。
同じDuty比であっても、電場が加わる時間と休止時間は大きく異なります。
周波数とパルス間隔、パルス幅の関係については、電気治療のHzって何?―周波数を基礎から理解するでも解説しています。
それでも電気走性が認められたことは、細胞が個々のパルスに瞬時に追従して移動方向を変えるという単純な仕組みでは説明できない可能性を示しています。
また、持続直流と比較してパルス直流では電気化学反応や細胞毒性に関する影響が少ないことも報告されています。
この結果は、電気走性を維持しながら刺激に伴う副次的な反応を減らす方法を考えるうえでも重要です。
二相性パルスや交流でも電気走性は起こるのか
臨床で使用する微弱電流機器には、単相性パルスだけでなく二相性パルスや交流を使用するものもあります。
二相性パルスでは、電場の方向が時間的に反転します。
そのため、持続直流や一方向性のパルス直流で確認された電気走性を、そのまま二相性パルスに当てはめることはできません。
細胞が電場方向を認識し、細胞骨格を再編成して移動するまでには時間が必要です。
電場が反転した場合、細胞がどの程度の速さで方向を変えるのかという問題があります。
例えば100 Hzの刺激では、1周期は10 msです。
一方、細胞の方向転換を観察した基礎研究では、細胞種や実験条件によって秒から分単位の応答が報告されています。
この時間差から、高頻度の二相性パルスでは持続直流とは異なる細胞応答が生じる可能性があります。
一方、電場の反転周期が短いことだけを根拠に、電気走性が起こらないと断定することもできません。
細胞の応答には電場の時間平均、波形の非対称性、細胞膜の分子分布、刺激時間などが関係する可能性があります。
また、電場が反転していても、正負の位相の振幅や持続時間が異なれば、刺激の時間的な対称性は変化します。
単に「二相性パルス」と分類するだけでは十分ではありません。
ここで最初に説明したDirectednessとMigration speedの違いが重要になります。
二相性パルスや交流によって細胞の移動速度が変化したとしても、それだけで電気走性が起きたとは判断できません。
一方、方向性が認められなかったとしても、細胞の運動性に変化がないとは限りません。
実際の治療器で使用する波形の違いについては、HVMCデルタのHV・MC・MCCの設定と波形を考察した記事でも取り上げています。
正味電荷と細胞への作用は同じではない
電気刺激の波形を考えるうえでは、電荷量も重要です。
電荷量は電流を時間で積分したものであり、一定電流であれば次の式で表せます。
Q = I × t
- Q:電荷量(C)
- I:電流(A)
- t:時間(s)
二相性パルスでは、正負の位相で流れる電荷量が等しければ、理想的には1周期あたりの正味電荷はゼロになります。
しかし、正味電荷がゼロであることと、細胞に生物学的作用がないことは同じではありません。
細胞は瞬間的な電場の強さや時間的な変化に反応する可能性があります。
また、電極界面での電荷平衡と、標的細胞周囲に形成される局所電場の時間平均は別の問題です。
そのため、波形を比較する際には周波数だけでなく各位相の振幅、持続時間、電荷量、極性反転のタイミングを確認する必要があります。
電極界面の電気化学反応
直流や単相性パルスでは、電極界面で電気化学反応が起こることがあります。
電極材料や通過電荷量などによって、pHやイオン濃度、反応生成物が変化する可能性があります。
培養細胞の実験では、このような変化が細胞の生存率や遊走に影響することがあります。
そのため、電場による直接的な細胞応答と、電極界面の反応による間接的な作用を区別する必要があります。
また、電荷平衡した二相性パルスであっても、すべての電気化学反応がなくなるわけではありません。
電極材料や電極電位、各位相の条件によって反応は異なります。
臨床の微弱電流を考える場合にも、周波数や電流値だけでなく波形の形状、パルス幅、電荷量、電極材料などを確認する必要があります。
細胞遊走が起これば組織修復は促進されるのか
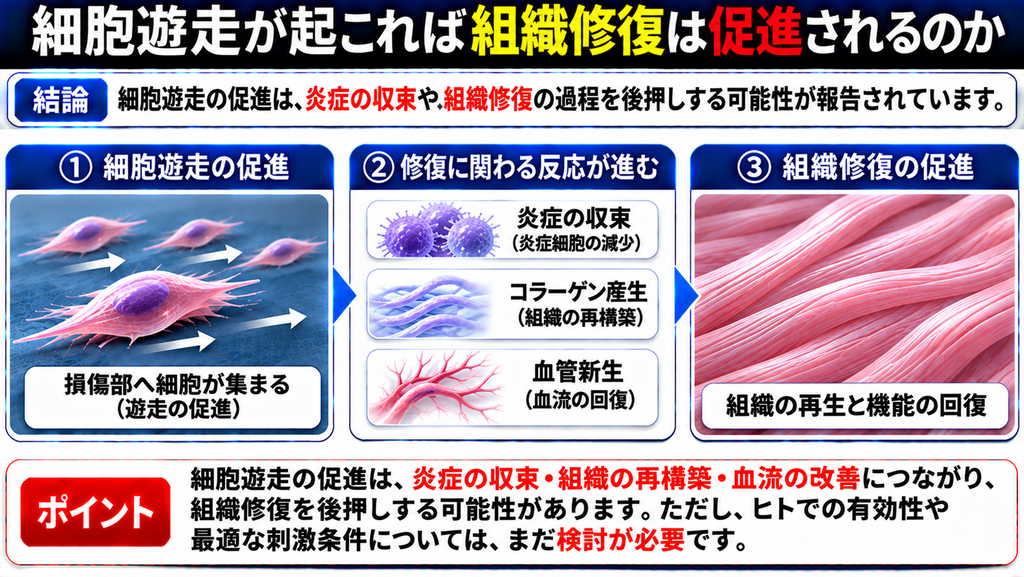
ここまでの研究から、電場によって細胞の移動方向や運動性が変化することは確認されています。
しかし、細胞が移動することと組織が修復されることは同じではありません。
培養細胞の創傷閉鎖と組織修復
培養細胞の研究では、細胞層に人工的な傷を作り、その閉鎖速度を測定する方法があります。
これはスクラッチアッセイと呼ばれる方法です。
創傷閉鎖には細胞遊走が関与しますが、細胞増殖なども影響します。
そのため、閉鎖率が増加したという結果だけで、電気走性が促進されたと判断することはできません。
また、培養細胞層が閉鎖したとしても、実際の組織で十分な強度や機能が回復したことを意味するわけではありません。
動物実験では何が確認されているのか
Zhaoらの2006年研究では、電場による細胞遊走の分子機序に加えて、生体内の創傷修復との関係も検討されています。
内因性の創傷電場を操作すると創傷治癒が変化し、PI3KγやPTENなどの分子が電気走性に関与することが示されました。
この研究は、電気走性が単なる培養細胞特有の現象ではなく、生体内の創傷修復にも関係する可能性を示しています。
一方、創傷修復には細胞増殖、血管新生、炎症反応、細胞外基質形成など多くの過程が関与します。
また、PI3K/PTENは電気走性以外の細胞機能にも関与しています。
遺伝子操作によって創傷閉鎖が変化したとしても、その変化のすべてを電気走性だけで説明することはできません。
筋・腱・靱帯の修復にどこまで結びつくのか
スポーツ障害で対象となる筋・腱・靱帯では、皮膚とは組織構造が異なります。
筋損傷では筋衛星細胞や炎症細胞、線維芽細胞などが修復過程に関与します。
腱や靱帯では、細胞外基質の配向やコラーゲン形成も重要です。
さらに実際の組織内では、細胞が三次元の細胞外基質を通過する必要があります。
そのため、皮膚のケラチノサイトで確認された電気走性を、そのまま筋や腱の修復に当てはめることはできません。
一方、靱帯線維芽細胞や三次元コラーゲン内の線維芽細胞でも電気刺激への反応が確認されていることは、皮膚以外の組織で電場が細胞運動に関与する可能性を考える材料になります。
今後は、実際の筋損傷や腱損傷モデルにおいて、細胞遊走の変化と組織修復の関係を直接評価する研究が重要になると思います。
微弱電流療法にどう結びつけるか
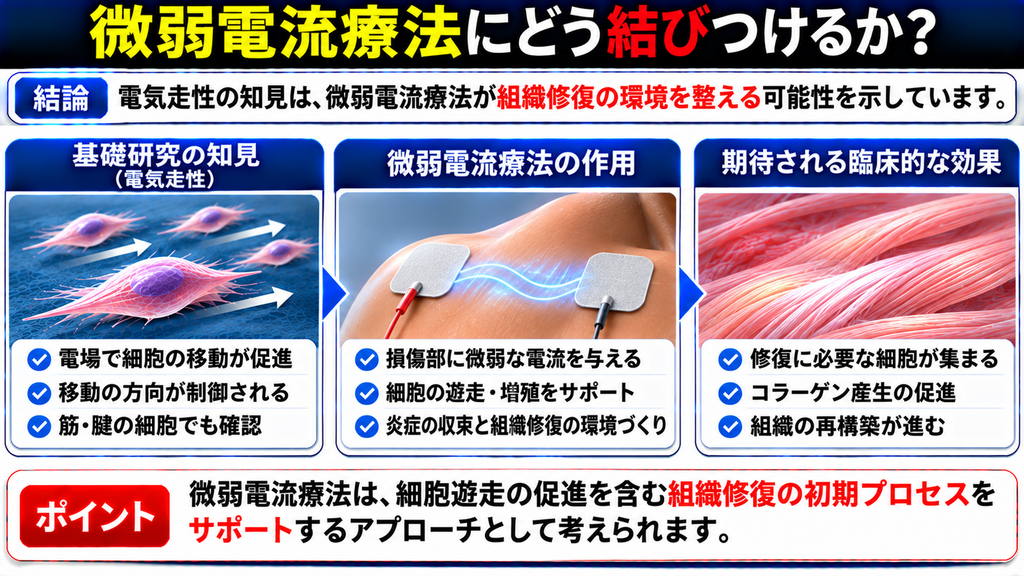
ここまで電気走性の基礎研究を見てきました。
細胞には電場を感知し、一定方向へ移動する性質があります。
また、その反応にはPI3K/PTENなどの細胞内シグナルや、Galvaninのような膜タンパク質が関与することが報告されています。
しかし、これらの研究結果を臨床の微弱電流療法に結びつける際には、いくつか考えるべきことがあります。
臨床の微弱電流で同じ電場が形成されるのか
基礎研究では、培養細胞に一定の電場強度を加えて反応を観察することができます。
一方、臨床では皮膚表面に電極を配置し、複数の組織を介して電流を流します。
組織ごとの導電率や電極配置、電流が通過する断面積によって電場の分布は変化します。
そのため、機器の電流設定だけでは損傷部に形成される電場強度を判断できません。
この点は、四肢から微弱電流を流すMCCを考える場合にも共通しています。MCCは本当に何をしている?四肢から微弱電流を流す意味では、電極配置と電流経路について考察しています。
微弱電流によって電気走性が生じるかどうかを検討するには、実際に標的組織へどの程度の電場が加わっているのかを考える必要があります。
周波数だけで細胞の反応は決まらない
臨床では周波数が刺激条件の中心として扱われることがあります。
しかし、細胞遊走の研究では電場強度、極性、Duty比、刺激時間なども重要です。
特に電気走性を考える場合には、電場の方向が時間的に維持されるのか、周期的に反転するのかという違いがあります。
同じ100 Hzという設定でも、単相性パルスと二相性パルスでは電場の時間的な性質が異なります。
そのため、周波数だけで電気走性への作用を説明することはできません。
電気走性を促すことが治療の目的なのか
ここは臨床で考えておきたいところです。
仮に電気刺激によって細胞の移動方向を制御できたとしても、それが組織修復にとって適切な方向であるとは限りません。
細胞の種類によって陽極方向と陰極方向への反応が異なり、細胞の状態によっても移動方向が変わることが報告されています。
また、組織修復では細胞が移動するだけでなく、適切な時期に増殖や分化を行い、細胞外基質を形成する必要があります。
したがって、電気走性が生じること自体を治療効果と同一視することはできません。
例えば筋損傷に対して微弱電流を使用する場合、筋衛星細胞が損傷部へ方向性を持って移動することを作用機序として説明するには、まだ直接的な研究が不足しています。
また、電気刺激の作用は細胞遊走だけではありません。神経への感覚入力や筋収縮を目的とした刺激については、鍼通電の感覚レベルと運動レベルの違いで整理しています。
臨床で微弱電流を使用する際には、電気走性を確立した治療機序として扱うのではなく、今後検証すべき細胞応答の一つとして位置づけるのが適切だと思います。
微弱電流は組織修復にどのような効果をもたらすのか?|電気走性から考える仮説
ここまで、細胞が電場を感知する仕組みや、電場によって細胞の移動方向が変化することを紹介してきました。
では、これらの研究を踏まえると、臨床で使用する微弱電流にはどのような効果が期待できるのでしょうか。
ここからは、今回紹介した基礎研究をもとに私なりに考えた仮説です。微弱電流療法によって以下の作用が実際の損傷組織で起こることが証明されているわけではありません。
微弱電流が修復に必要な細胞の移動を補助する可能性
組織が損傷すると、炎症細胞や線維芽細胞などが修復過程に関与します。
これらの細胞が適切な場所へ移動することは、組織修復に必要な過程の一つです。
皮膚の創傷では、損傷によって形成される内因性電場が細胞の移動方向に影響することが報告されています。
また、外部から電場を加えることで細胞の移動方向を変化させられることも、培養細胞の研究で確認されています。
ここから考えられるのは、微弱電流によって損傷組織内の電気的環境が変化し、修復に関わる細胞の移動方向が調節される可能性です。
仮に外部から加えた電場が、修復に必要な細胞を損傷部へ向かわせる方向に作用すれば、細胞が集まる過程を補助できるかもしれません。
ただし、細胞の種類によって陽極方向と陰極方向への反応は異なります。電極をどちらに配置すれば修復細胞が損傷部へ集まるのかを、現在の研究だけで決めることはできません。
細胞が移動しやすい環境を作る可能性
電気刺激による細胞の反応は、一定方向への移動だけではありません。
靱帯線維芽細胞の研究では、電場によって細胞の移動速度や配向が変化しました。
また、三次元コラーゲン内の線維芽細胞でも、電気刺激による細胞移動の変化が報告されています。
これらの結果から、微弱電流が細胞の移動方向だけでなく、運動性や周囲の基質との接着にも影響する可能性が考えられます。
この場合、必ずしも細胞が陰極や陽極へ向かって移動する必要はありません。
細胞の運動性や接着状態が変化することで、修復過程における細胞の分布が変わる可能性があります。
さらに、腱や靱帯では細胞外基質の配向が組織の力学的特性に関係しています。
電気刺激によって線維芽細胞の配向が変化すれば、その後の細胞外基質形成にも影響するかもしれません。
もっとも、細胞の運動性や配向が変化することと、組織の修復速度や強度が改善することは別の問題です。
炎症から修復へ移行する過程に影響する可能性
電気走性の研究では、単球やマクロファージなどの炎症細胞も電場に応答することが確認されています。
Hoareらの研究では、単球とマクロファージで移動方向が異なり、電場によってマクロファージの機能にも変化が認められました。
また、感染によってマクロファージの電気走性の方向が変化することも報告されています。
組織修復では、損傷直後に炎症細胞が集まり、損傷組織の処理や修復に関わる反応が進みます。
その後、修復の段階に応じて細胞の構成や働きが変化します。
この過程で微弱電流が炎症細胞の移動や機能に影響すれば、損傷部の修復環境が変化する可能性があります。
ただし、炎症細胞を集めることや移動を促すことが、必ずしも修復に有利とは限りません。
損傷後の時期や細胞の状態によって必要な反応は異なります。
したがって、微弱電流によって炎症が抑えられる、あるいは炎症から修復への移行が早まるとまでは、電気走性の研究だけでは判断できません。
私が考える微弱電流の作用仮説
これらを一つにつなげると、次のような仮説が考えられます。
微弱電流によって損傷組織内の電場分布が変化し、それを感知した細胞の移動方向や運動性、接着状態が調節される。その結果、修復に関わる細胞の分布や細胞外基質形成に影響し、組織修復を補助する可能性がある。
この仮説の出発点は、電場によって細胞の移動方向が変化するという基礎研究の結果です。
一方、臨床で使用する微弱電流によって筋や腱の損傷部にどの程度の電場が形成されるのか、その電場が修復細胞にどのような反応を引き起こすのかは、まだ十分に分かっていません。
特に、電気走性が確認されたとしても、それが実際の組織修復の促進につながるかどうかは別に評価する必要があります。
今後、損傷組織内の電場分布、細胞遊走、組織修復の程度を同時に評価する研究が進めば、微弱電流療法の作用機序をより具体的に説明できるようになると思います。
まとめ
今回紹介した研究から、細胞は電場を感知し、その方向に応じて移動する性質を持つことが分かります。
また、PI3K/PTENなどの細胞内シグナルやGalvanin(TMEM154)のような電場の感知に関わる分子も報告されており、電気走性の仕組みは少しずつ明らかになってきています。
今回の研究を整理すると、重要な点は次の5つです。
- 細胞は電場によって移動方向を変えることがある。 ただし、陰極と陽極のどちらへ移動するかは細胞の種類や状態によって異なります。
- 電気刺激による細胞の移動速度と方向性は別の反応である。 細胞の運動性が高まっても、必ずしも電気走性が促進されたとは限りません。
- 細胞が存在する環境によって電場への応答は変化する。 二次元培養と三次元コラーゲン環境では、同じ細胞でも移動方向が異なる場合があります。
- 臨床で設定する電流値から、損傷組織に形成される電場強度は直接判断できない。 電極配置や組織の導電率、波形などを考慮する必要があります。
- 電気走性が組織修復に関与する可能性はあるものの、臨床の微弱電流による修復促進が証明されたわけではない。 特に筋や腱の損傷では、直接的な検証が不足しています。
では、微弱電流療法によって組織修復が促進されるとすれば、どのような仕組みが考えられるのでしょうか。
私はその一つとして、微弱電流によって損傷組織内の電場分布が変化し、修復に関わる細胞の移動方向や運動性、接着状態などが調節される可能性を考えています。
その結果、損傷部における細胞の分布や細胞外基質の形成に影響し、組織修復を補助するという仮説です。
これは電気走性の基礎研究から考えられる作用機序であり、実際の微弱電流療法で確認された効果ではありません。
特に、電気走性が確認された細胞実験と、筋・腱・靱帯などの損傷組織では、細胞を取り巻く環境が大きく異なります。
また、電場によって細胞が移動したとしても、その方向やタイミングが組織修復にとって適切であるとは限りません。
今後は、臨床で使用する微弱電流によって損傷部にどの程度の電場が形成されるのか、その電場によって細胞の移動がどのように変化するのか、そして実際の組織修復に結びつくのかを検証する必要があります。
微弱電流の作用を電気走性だけで説明することはできませんが、細胞を単に活性化させるのではなく、修復に関わる細胞の動きや分布を調節する可能性があるという視点は、今後の微弱電流療法を考えるうえで重要だと思います。
参考文献
- Zhao M, et al. Electrical signals control wound healing through phosphatidylinositol-3-OH kinase-gamma and PTEN. Nature. 2006;442:457–460. https://doi.org/10.1038/nature04925
- Belliveau NM, et al. Galvanin (TMEM154) is an electric-field sensor for directed cell migration. Cell. 2026;189(13):4107–4121.e22. https://doi.org/10.1016/j.cell.2026.04.026
- Nuccitelli R, et al. Imaging the electric field associated with mouse and human skin wounds. Wound Repair Regen. 2008;16:432–441. https://doi.org/10.1111/j.1524-475X.2008.00389.x
- Nuccitelli R, et al. The electric field near human skin wounds declines with age and provides a noninvasive indicator of wound healing. Wound Repair Regen. 2011;19:645–655. https://doi.org/10.1111/j.1524-475X.2011.00723.x
- Ren X, et al. Keratinocyte electrotaxis induced by physiological pulsed direct current electric fields. Bioelectrochemistry. 2019;127:113–124. https://doi.org/10.1016/j.bioelechem.2019.02.001
- Ende K, et al. Migration of human T cells can be differentially directed by electric fields depending on the extracellular microenvironment. iScience. 2024;27:109746. https://doi.org/10.1016/j.isci.2024.109746
- Sun S, Wise J, Cho M. Human fibroblast migration in three-dimensional collagen gel in response to noninvasive electrical stimulus. I. Characterization of induced three-dimensional cell movement. Tissue Eng. 2004;10:1548–1557. https://doi.org/10.1089/ten.2004.10.1548
- Chao PHG, et al. Effects of applied DC electric field on ligament fibroblast migration and wound healing. Connect Tissue Res. 2007;48:188–197. https://doi.org/10.1080/03008200701424451
- Tsai CH, Lin BJ, Chao PHG. α2β1 integrin and RhoA mediates electric field-induced ligament fibroblast migration directionality. J Orthop Res. 2013;31:322–327. https://doi.org/10.1002/jor.22215
- Hoare JI, et al. Electric fields are novel determinants of human macrophage functions. J Leukoc Biol. 2016;99:1141–1151. https://doi.org/10.1189/jlb.3A0815-390R
- Sun Y, et al. Infection-generated electric field in gut epithelium drives bidirectional migration of macrophages. PLoS Biol. 2019. https://pubmed.ncbi.nlm.nih.gov/30964858/
- Cleary SF, Liu LM, Graham R, Diegelmann RF. Modulation of tendon fibroplasia by exogenous electric currents. Bioelectromagnetics. 1988;9:183–194. https://doi.org/10.1002/bem.2250090210
- Sillman AL, et al. Human dermal fibroblasts do not exhibit directional migration on collagen I in direct-current electric fields of physiological strength. Exp Dermatol. 2003. https://doi.org/10.1034/j.1600-0625.2002.120406.x
- Guo A, et al. Effects of physiological electric fields on migration of human dermal fibroblasts. J Invest Dermatol. 2010. https://doi.org/10.1038/jid.2010.96
- Marino AA, Becker RO. Piezoelectricity in hydrated frozen bone and tendon. Nature. 1975;253:627–628. https://doi.org/10.1038/253627a0
- Using tendon inherent electric properties to consistently track induced mechanical strain. Ann Biomed Eng. 2012. https://doi.org/10.1007/s10439-011-0504-1
コメント